ことの始まり
網膜色素変性症の新規原因遺伝子探索を目的としてヒト網膜色素上皮細胞株ARPE-19とレチノブラストーマ細胞株Y79からベクターキャッピング法を用いて完全長cDNAライブラリーを作製し、トランスクリプトーム解析を行いました。その中に多くの長鎖遺伝子が含まれており、その1つがフィラミンA(FLNA)です。FLNAをコードする9個の長鎖cDNAが得られたので、それらの全長塩基配列決定することにしました。
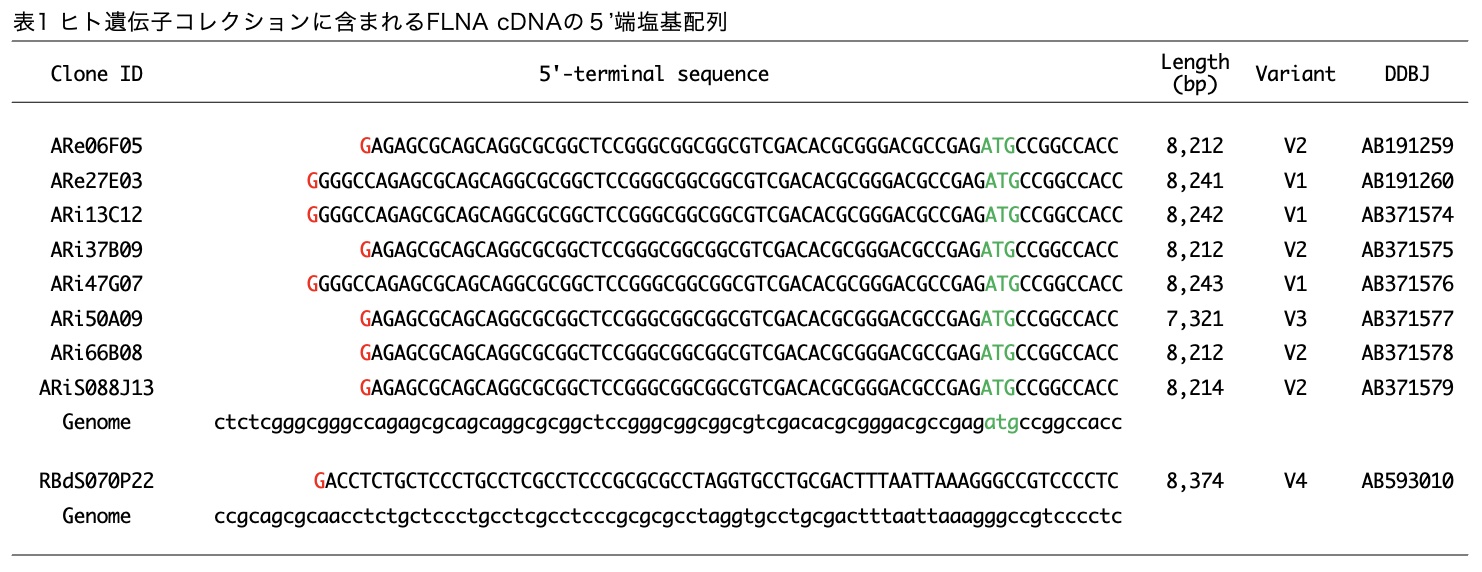
ヒト遺伝子コレクションに含まれるFLNA cDNA
我々のヒト遺伝子コレクションには、ARPE-19細胞株から得られた8個、Y79細胞株から得られた1個のFLNA完全長cDNAクローンが含まれています(HP00079)。各クローンの5’端部分塩基配列をゲノムの配列とともに表1に示します。いずれのクローンも5’端に余分なGが付加しており、キャップ付加部位から始まる完全長cDNAです。ARPE-19由来cDNAの転写開始点は2箇所あり、Y79由来cDNAの転写開始点はさらに上流にあります。Variantは図1に示した選択的スプライシングバリアントの意味です。ARPE-19から8個も得られている発現量の多い遺伝子であるにもかかわらず、短縮cDNAは含まれておらず、驚きの完全長率100%です。
cDNAがコードするFLNA遺伝子のエクソン-イントロン構造
図1にコレクションに含まれている9個のcDNAがコードするFLNA遺伝子のエクソン-イントロン構造を示します。転写開始点の違いと選択的スプライシングにより、コードしているタンパク質のアミノ酸配列が異なる4種類のバリアントが生成しています。V1とV4は47個、V2は46個、そしてV3は42個のエクソンからなります。選択的スプライシングにより、V2は第30エクソンが、またV3は第37エクソンの途中から第42エクソンの途中までのエクソンが欠失しています。ただこれらの欠失によりフレームシフトは起こらず、V2で11アミノ酸残基、V3で305アミノ酸残基の部分欠失が起こるだけです。Y79細胞株から得られたV4は、転写開始点が他のバリアントより上流にあり、その結果、開始コドンも上流から始まり、タンパク質のN端が27アミノ酸残基長くなります。

図1 cDNAがコードするFLNA遺伝子のエクソン-イントロン構造
RefSeq1(NM_001456)とRefSeq2(NM_001110556)は、いずれも第1エクソンが我々のクローンより上流にあり、第2エクソンはV4の第1エクソンと同じです。しかし、転写開始点が異なりその結果開始コドンも異なるV1、V2、V3に対応するRefSeqは記載されていません。RefSeqに注釈をつける際、これらを5’端が欠失した短縮クローンと判定した可能性があります。RefSeq2がコードしているタンパク質はV4と同じです。RefSeq1はV2に対応しますが、N端はV2より長くなります。従って、V1、V2、V4もRefSeqとして追加すべきです。
GenBankに登録されているFLNA cDNA
図2にGenBankにmRNAとして登録されているFLNA cDNAのエクソン-イントロン構造を示します。開始コドンから始まるORFを含んでいるcDNAは11個あり、その中の9個は我々が登録したものです。
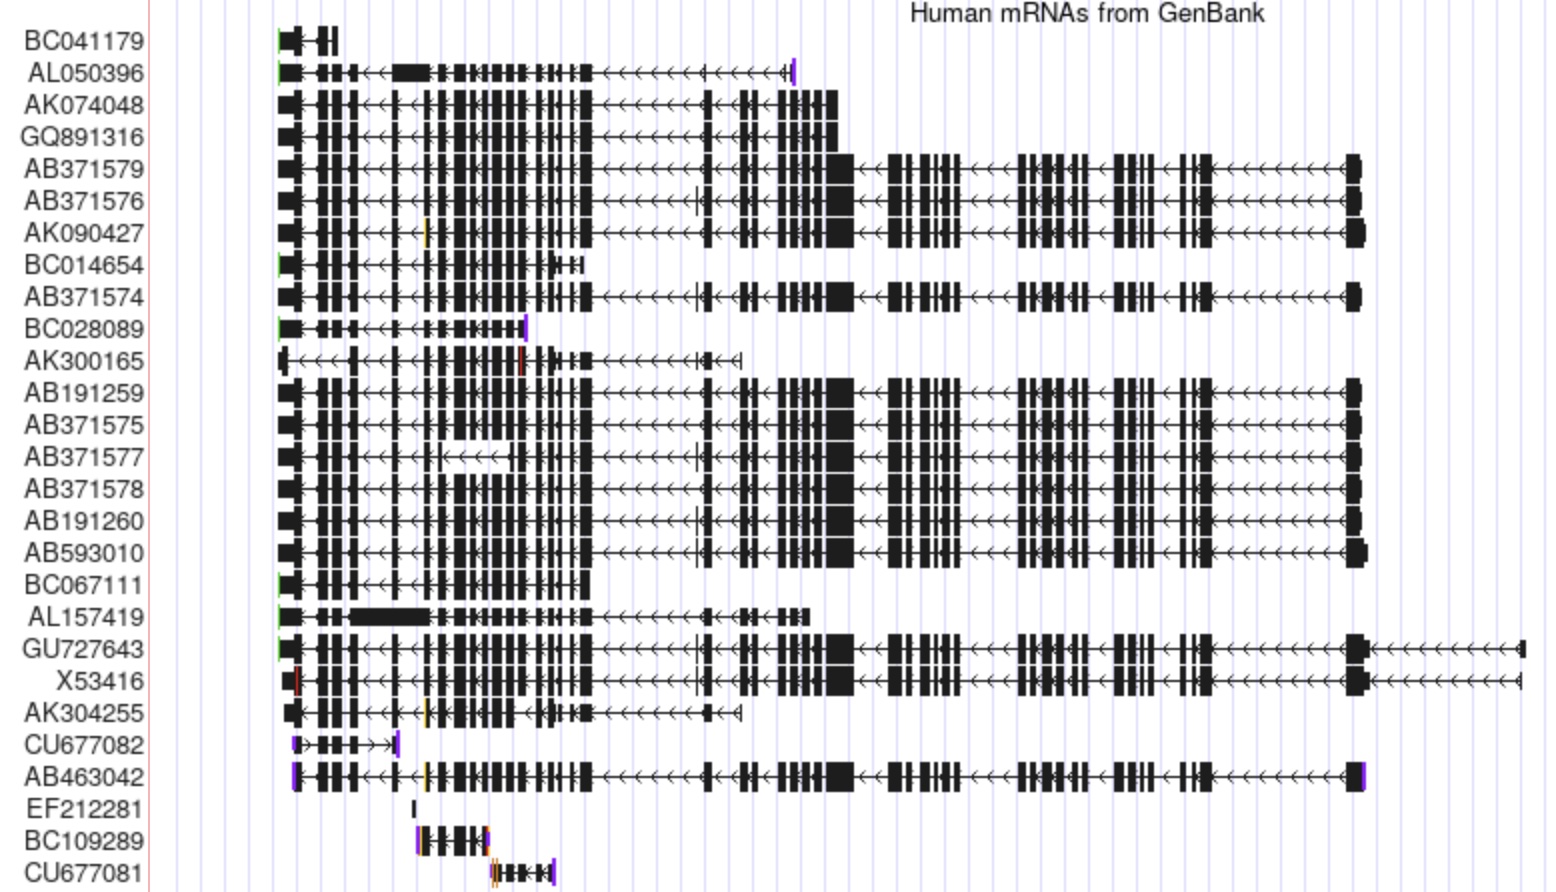
図2 GenBankに登録されているFLNA cDNAのエクソン-イントロン構造
1990年、GorlinらはヒトFLNAのcDNAクローニングに成功しました(Gorlin et al., 1990)。 臍帯静脈内皮細胞のλgt11cDNA発現ライブラリーからFLNAに対するモノクローナル抗体を用いてcDNA断片を含むクローンを得、これを用いて再スクリーニングを行い全領域をカバーする7個のcDNA断片を得ています。このcDNAの塩基配列(X53416)は図1のRefSeq2に対応します。ポリ(A)付加シグナルがないので、3’端は欠失していると思われます。
2002年、かずさDNA研が膵臓cDNAライブラリーから取得した、FLNAをコードするクローンFLJ00343の塩基配列(AK090427)をDDBJに登録しました。彼らの方法ではキャップ部位まで届かないので5’端は欠失していますが、転写開始点は我々のV4に対応すると考えられ、ORFは第29エクソンが欠失したRefSeq1と同じになります。なお、かずさDNA研が登録したAB463042はORFのみを切り出したものです。
2004年、我々がARPE-19からクローン化した2個のFLNA完全長cDNA(AB191259、AB191260)をDDBJに登録し、2007年にさらに6個(AB371574 〜 AB371579)を追加登録しました。2010年にY79由来の1個のFLNA完全長cDNA(AB593610)を登録しました。
2010年、Liらは”epididymis secretory sperm binding protein Li 190P”という名前で、FLNAの完全長cDNAの塩基配列(GU727643)をGenBankに登録しています(Li et al., 2010)。ただこれは精巣上体からクローニングしたものではなく、この時点で知られていた全長塩基配列とキャップ部位から始まる5’端の配列(例えばオリゴキャッピング法で得られた配列)を組み合わせて作成したものと思われます。
以上のことから、実験的に得られたFLNAの全長cDNAは、GorlinらとかずさDNA研のそれぞれ1個、そして我々の9個ということになります。単一mRNA分子由来なのはかずさDNA研と我々のcDNAです。
転写開始点
ARPE-19から得られた8個の完全長cDNAの転写開始点は、表1に示すように2箇所であり、Y79から得られた1個の完全長cDNAの転写開始点は、それより135bp上流にあります。GorlinらとかずさDNA研のcDNAはキャップ部位から始まる完全長cDNAではないので正確な転写開始点は不明です。
図3にオリゴキャッピング法で求めた転写開始点のデータベース(DBTSS)にあるFLNA遺伝子の転写開始点を示します。エクソン1には2箇所の転写開始点領域(TSS1とTSS2)が、エクソン2にも2箇所の転写開始点領域(TSS3とTSS4)が存在します。すなわち、FLNAの転写開始点はエクソン1以外にエクソン2の中にも存在することがわかります。その頻度を見るとエクソン2のTSS4が最も高いです。TSS3はY79細胞株から得られたV4の転写開始点に、TSS4はARPE-19細胞株から得られたV1、V2、V3の転写開始点にそれぞれ対応します。
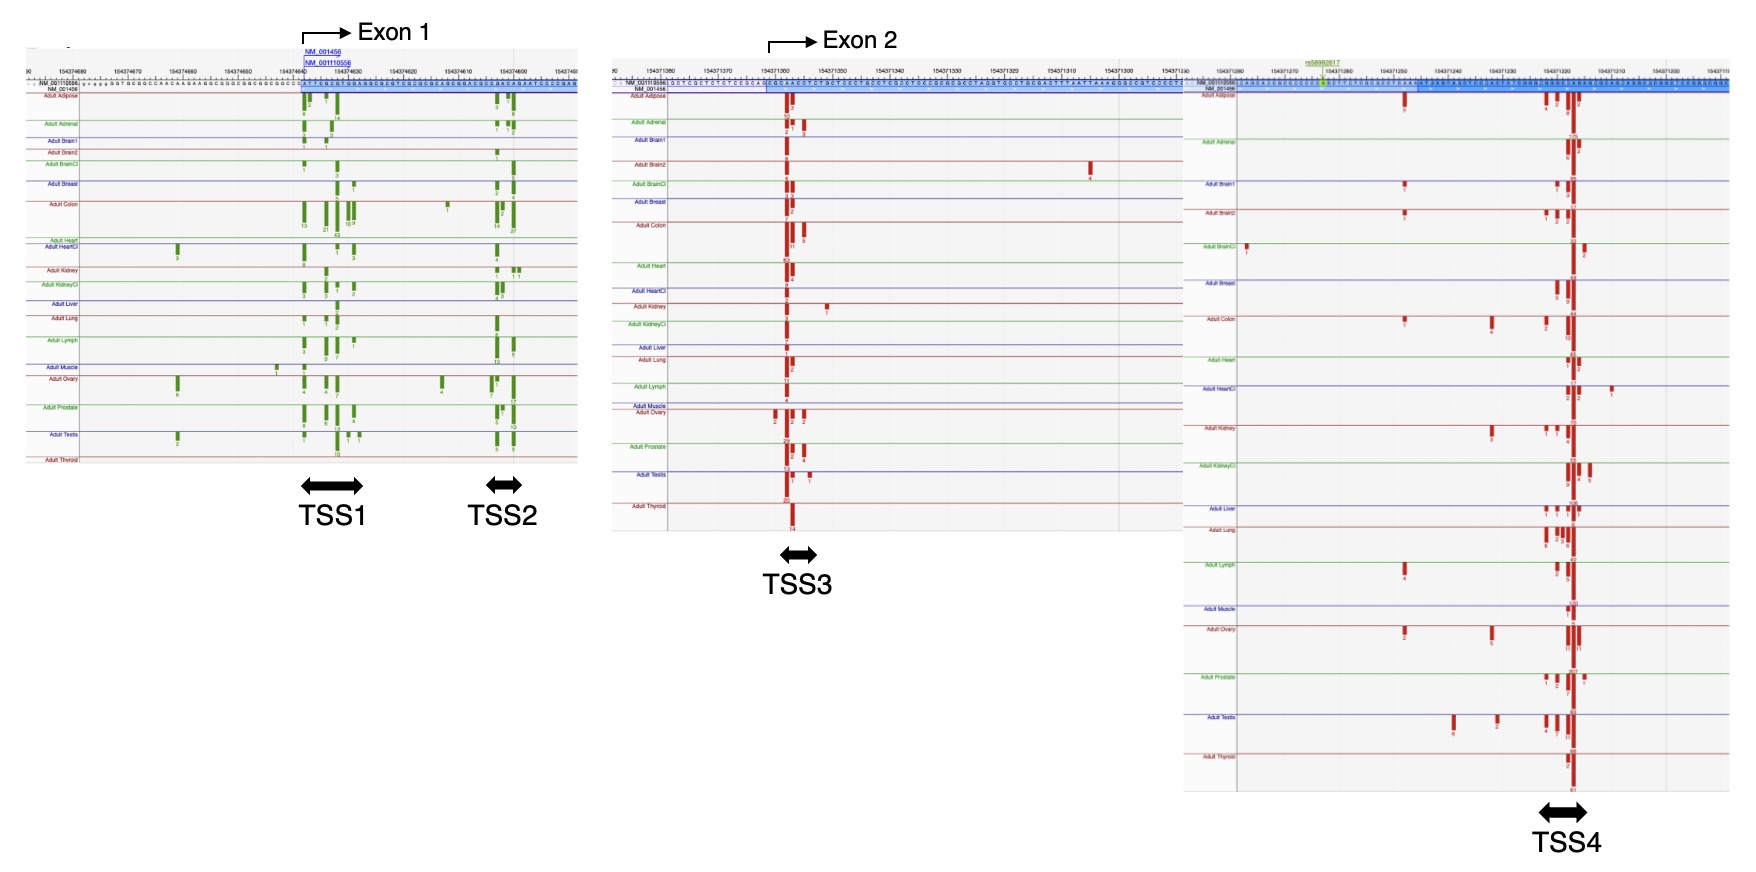
図3 DBTSSにあるFLNAの転写開始点
ここで出てくる疑問は、組織によって転写開始点が異なるのかということです。ARPE-19由来の転写開始点は8個ともTSS4であることから、組織による違いがあるのではと考えたくなります。ただ図3を見る限り、その頻度は異なるが組織に関わらずいずれの転写開始点も使用されています。組織には多くの細胞種が含まれるので、細胞種によってTSSが異なり、異なる発現制御を受けている可能性はあります。
N端アミノ酸配列
TSS1、TSS2、TSS3から始まるmRNAの場合、開始コドンはTSS3から数えて59番目や54番目のAから始まります。TSS4から始まるmRNAの場合、開始コドンはTSS4から数えて113番目のAから始まります。周辺の配列は前者は”AAAATGAGT”、後者は”GAGATGCCG”であり、いずれも典型的なKozak則とは合致しませんが、-3位の配列はそれぞれAとGであり、開始コドンになりうると考えられます。RefSeq1とRefSeq2はTSS1を採用しているので、開始コドンは前者となります。我々が得た完全長cDNAの5’端の結果とDBTSSの結果から、TSS4から始まるmRNAの開始コドンは後者であるといえます。
Gorlinらはタンパク質のN端はブロックされているためアミノ酸配列を決められませんでした。TSS4が転写開始点であることは確実なので、後者の開始コドンから始まるのは間違いありません。問題は前者の開始コドンが使われるかどうかです。
図4にラットとマウスのFLNAならびにヒトのFLNBとFLNCのN端アミノ酸配列を比較した結果を示します。ラットとマウスのFLNAは、ヒトFLNAと同じくN端側に2個のMetを有しており、2番目のMet以降は完全に一致していますが、N端27個のアミノ酸配列には違いが見られます。興味深いことに、ヒトFLNBはヒトFLNAの2番目のMetから始まり、ヒトFLNCはN端に余分な20個のアミノ酸配列を有しています。いずれも2番目のMet以降のアミノ酸配列は保存されています。以上の結果から、最初のMetから始まるFLNAは存在するが、N端の余分な配列に機能的な役割はないと考えるのが妥当です。
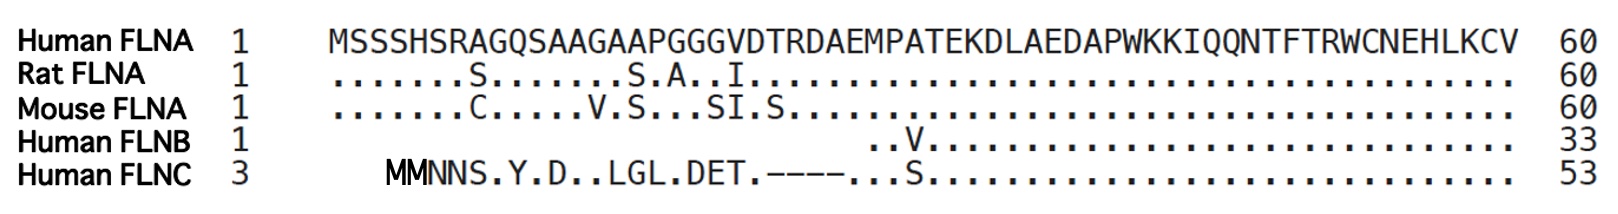
図4 N端アミノ酸配列の比較
選択的スプライシング
(1)第30エクソン
図1と図2を見てわかるように、第30エクソンの有無によるスプラシングバリアントはほぼ同じ割合で存在します。第30エクソン(24bp)の欠失によって、8アミノ酸残基の欠失が生じます。この欠失がFLNAの機能に影響するのでしょうか。
FLNAの構造の模式図(Razinia et al., 2012)を図5に示します。N端のアクチン結合部位、15個の免疫グロブリン様(Ig様)リピート(Ig1〜Ig15)、柔軟性の高いヒンジ1領域、8個のIg様リピート(Ig16〜Ig23)、ヒンジ2領域、C端にあるIg様リピート(Ig24)から形成されています。Ig1からIg23は棒状のロッドドメインを形成し、Ig24同士の結合によってV字型のホモ二量体を形成します。8アミノ酸残基欠失の場所はヒンジ1のすぐ上流にあるIg15のN端側に位置します。
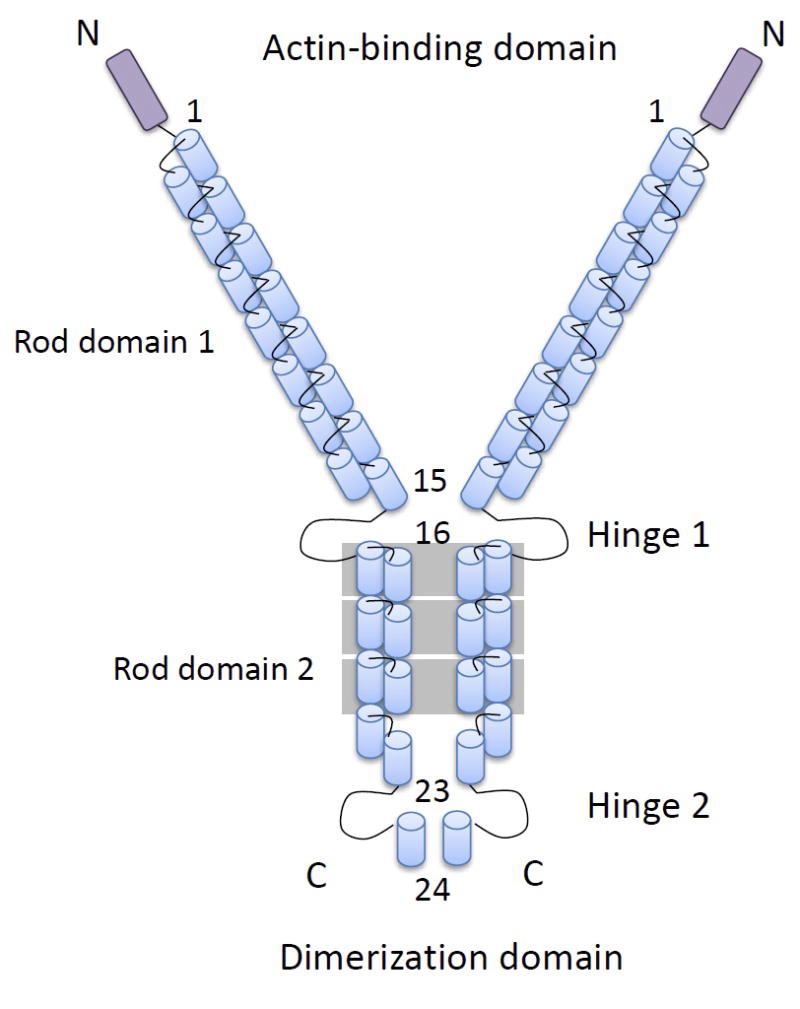
図5 FLNA二量体のドメイン構造
AlphaFoldにある両者のIg15の3次構造を図6に示します。これを見ると欠失した部分(V1649からL1656、赤線)は不定形で外にはみ出しています。これが欠失するとはみ出している部分が除かれるだけで、ドメイン全体の構造に影響がないように見えます。ただ、バリアントが同じ割合で存在するので、両者に何らかの機能的違いがある可能性はあります。Ig15にはF-アクチンやカルシウム感知受容体(CASR)が結合することが知られているので、これらの結合の強さが2つのバリアントで違いがあるのかも知れません。
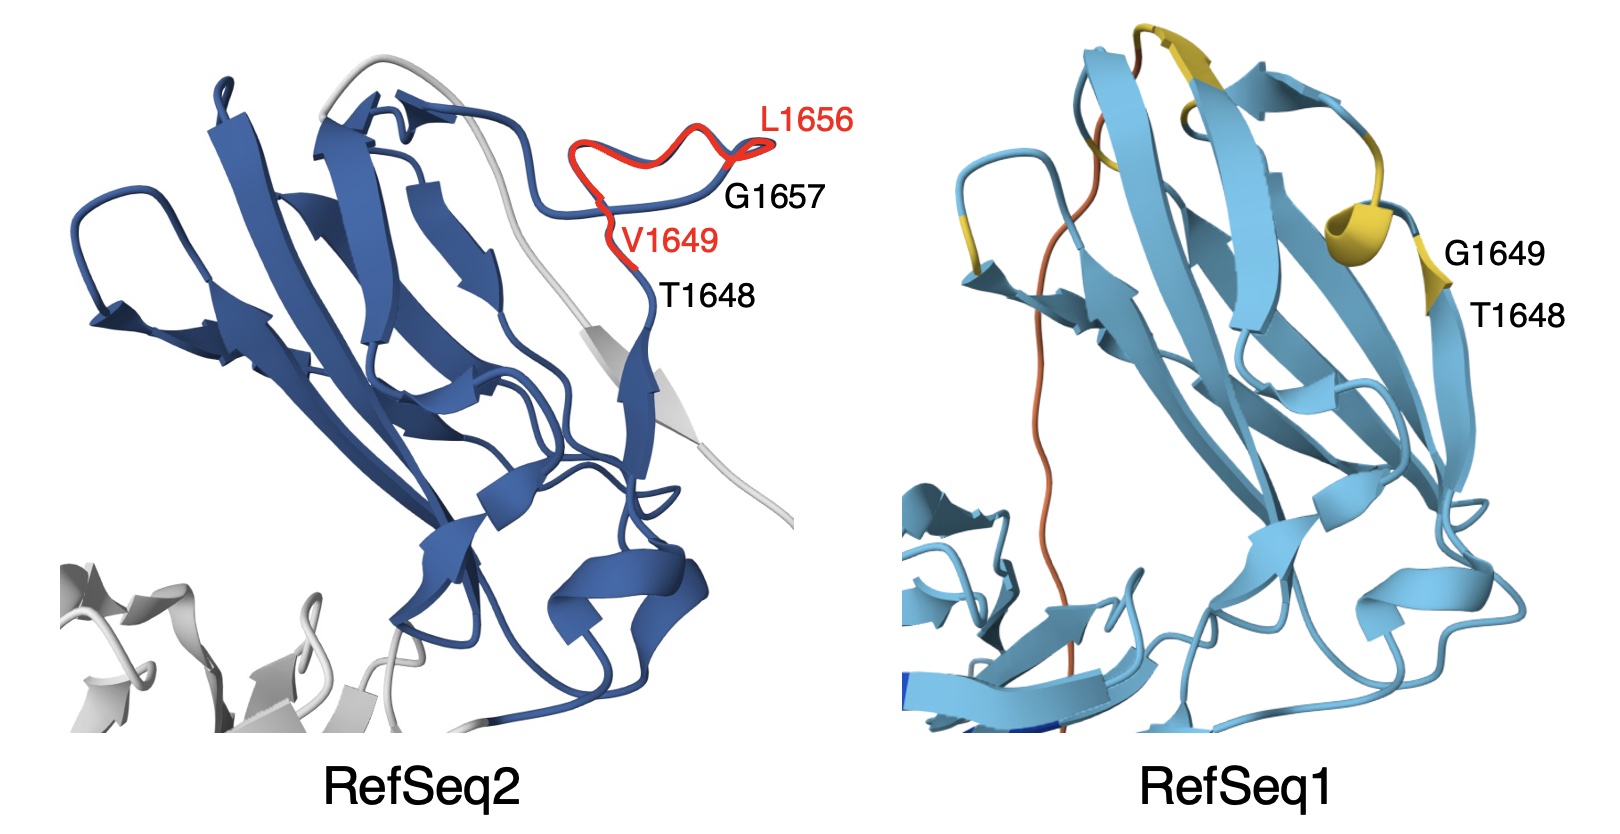
図6 FLNAのIg15スプライシングバリアントの3次構造の比較
(2)第37エクソン〜第42エクソン(V3)
ARPE-19から得たV3は、第37エクソンの途中から第42エクソンの途中までのエクソン(915bp)が欠失しており、その結果、Ig18の途中からIg21の途中までの305アミノ酸残基が欠失します。この部位には多くのタンパク質が結合することが知られているので、この部位の欠失により、これらの結合によって働く機能が消失することになります。このバリアントが機能を有しているかどうかは不明ですが、V3と同じスプライシングバリアントがEST(CN421698)として登録されていることから、人工産物ではないと思われます。なお、このESTは未分化ヒト胚性幹細胞株(H1、H2、H7)のcDNAライブラリーから得られたものです(Brandenberger et al., 2004)。
SNPs
cDNAの塩基配列をゲノムの塩基配列と比較すると、ARPE-19由来の8個のcDNAには、3’-UTRにSNP(rs34270382、delAinsCTG)が1箇所ありますが、それ以外の領域はゲノムと完全に一致します。GorlinらのcDNAは、ゲノム配列と異なる部位が5箇所あり、その中の3箇所は低頻度のSNPと思われますが、残り2箇所に相当するSNPは登録されていません。かずさDNA研のcDNAは、2箇所に不一致があり、相当するSNPは登録されていません。不一致の部分は、シーケンスエラーの可能性があります。
ヒトFLNAに関する主要総説
ヒトFLNAに関する主な総説を表2に示します(2026年時点)。1990年にGorlinらによってFLNAのcDNAがクローン化された後、FLNAの構造と機能に関する研究が進展し、2001年に2編の総説が発表されました[1a, 2]。その後、機械的性質・メカノセンサー[3a,12a, 14, 16]、細胞移動[3a, 6a, 15, 26]、細胞接着[4, 13, 15, 26]、細胞形態[6a, 7a]、シグナル伝達[4, 11a, 32, 37]といったFLNAの構造と諸機能との関連、遺伝病[5a, 28a]、癌[9,10, 18, 20, 21a, 22, 25a, 30, 31, 33, 34]、アルツハイマー病[23]といった病気との関連、血小板[19, 24, 29]、心血管系[8a, 27]、神経系[35, 36]、精子形成[17]におけるFLNAの役割について、新しい知見がまとめられています。
最もよく引用されているのは、構造と機能に関する5編の総説[1a, 2, 4, 11a, 15]です。最新の総説では、機能を考える上で重要な点を論じた2つの総説、翻訳後修飾によるFLNAの機能制御[32]とFLNAのS2152のリン酸化とがん、神経疾患との関係[37]が興味深いです。